在生命学科高层次人才中心和生命中心的共同支持下,清华大学生命学科高层次人才培养中心论坛每学期会邀请不同领域的前沿学者进行专题学术报告。该论坛倡导由研究生策划、主持、主导午餐会和撰写新闻稿件,借此机会加强师生互动,增进学术交流与讨论。本次论坛,我们邀请了一位长期深耕DNA损伤应答的杰出学者——哥伦比亚大学查珊(Shan Zha)教授。
2026年10月14日,受清华大学生命学院王海峰老师邀请,哥伦比亚大学大学查珊教授做客清华大学生命学科高层次人才培养中心论坛,进行学术报告。会议由生命科学学院博士生黄可韵主持。报告会在生物医学馆E109会议室举行,现场座无虚席。
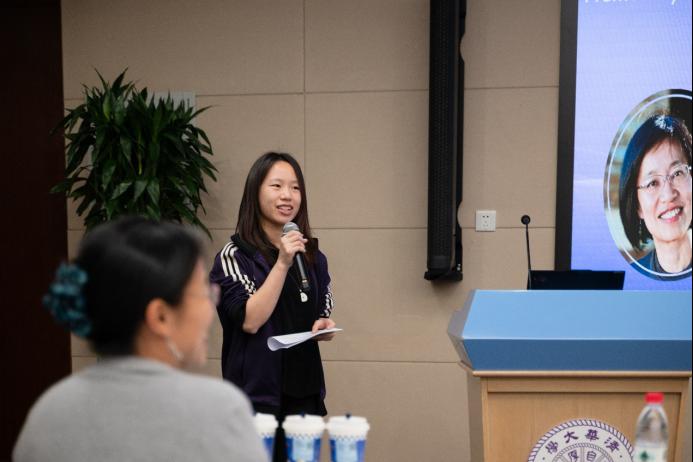
图1 主持人做开场介绍
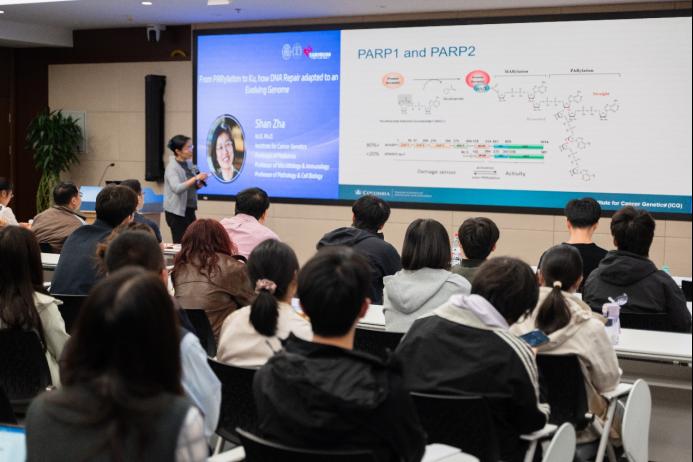
图2 查珊教授作报告
报告围绕 DNA 损伤应答相关分子的功能与调控展开,从 PARP 相关机制切入,进一步探讨经典 DNA 修复因子 Ku 在 RNA 调控与先天免疫中的新功能。
PARP2与DNA复制相关损伤修复:从分子机制到造血毒性
PARP1/2抑制剂 (PARPi) 的出现深刻改变了部分 BRCA1/2 缺陷肿瘤的靶向治疗策略。然而,最近PARPi的临床应用仍受到严重贫血及治疗相关白血病等血液学不良反应的限制,而其潜在分子机制尚未得到充分阐明。
查珊教授团队发现与正常发育的Parp2敲除小鼠(Parp2⁻/⁻)不同,表达催化失活 PARP2E534A的 Parp2EA/EA 小鼠会在胚胎期发生依赖 TP53 和 CHK2 的红系造血衰竭致死。
进一步研究发现,DNA损伤主要激活 PARP1,而DNA复制则能够强烈激活 PARP2。PARP2 会选择性地识别并激活于 5′-磷酸化 DNA 缺口,包括冈崎片段之间需要DNA连接酶LIG1和IG3填补的缺口。然而,催化失活的 PARP2 会阻碍 LIG1 和LIG3介导的DNA 连接,导致复制叉崩溃。有趣的是, PARP2缺失不会产生同样的阻碍效应。由于红系前体细胞具有极快的 DNA 复制速度,这种复制叉崩溃对其尤为致命。
该研究揭示了 PARP2 在 5′-磷酸化 DNA 缺口处发挥的结构性调控功能,解释了为什么 PARP2 催化失活会产生不同于蛋白缺失的严重表型,并为理解 PARPi相关贫血,以及治疗过程中TP53/CHK2功能缺失细胞的选择性富集提供了新的见解。
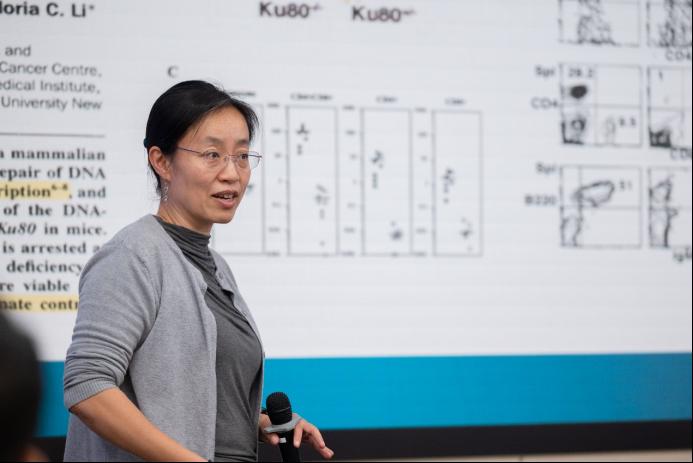
图3 报告会精彩瞬间
PARP-PARG调控PAR稳态与核内凝聚体
在细胞中,PARP-PARG 系统通过PAR的生成与降解,动态调节 DNA 损伤应答。其中,PARP1/2识别DNA缺口后在原位合成 PAR,促进相关修复因子的募集,而PARG 则负责降解 PAR,帮助细胞及时重置这一信号过程。为什么 PAR (多聚 ADP-核糖) 必须经历动态周转、不能持续积累,其生物学意义仍未完全阐明。
查珊教授团队2026年的最新研究发现,抑制 PARG 可诱导 PARP1 和 PAR 依赖的核内凝聚体形成,并将 XRCC1 及其相关 DNA 修复因子隔离其中。值得注意的是,这些凝聚体并非活跃DNA断裂位点上的正常修复结构。相反,XRCC1等PAR 结合蛋白被异常招募并聚集后,细胞核中可供利用的修复蛋白池减少,影响它们向其他真实DNA损伤位点的募集,最终产生细胞毒性。
这项研究表明,PAR信号并非越强越有利于DNA修复,其动态平衡一旦打破,原本有助于组织修复反应的信号级联反应,也有可能导致修复蛋白的异常隔离。
图4 查珊教授与提问师生进行互动
DNA修复因子Ku参与RNA先天免疫与基因组演化的全新功能视角
Ku70和Ku80 组成环状异源二聚体,是经典非同源末端连接 (non-homologous end joining,NHEJ) DNA修复途径的起始因子。Ku能够识别并结合DNA双链断裂末端,进而招募NHEJ相关因子, 启动DNA损伤修复。
尽管已有研究发现 Ku 能够结合双链 RNA(dsRNA),并可使突变型 DNA-PKcs 滞留于核糖体 RNA(rRNA)上,但在遗传背景正常的细胞中,Ku与RNA相互作用的生理功能此前仍不明确。
查珊教授团队发现,尽管人类与小鼠的基因组大小相近,人类细胞中的Ku表达量却约为小鼠细胞的100倍。值得一提的是,尽管 Ku能够结合 dsRNA,但其与 dsRNA亲和力比双链DNA低约 10–100倍。这表面,人类细胞中较高的 Ku 表达水平,可能使其能够充分结合dsRNA,并发挥NHEJ之外的生理功能。
进一步研究发现, Ku耗竭会通过dsRNA感知因子 MDA5、RIG-I 及其下游衔接蛋白 MAVS,强烈激活干扰素和NF-κB信号通路。持续降解Ku则会进一步激活其他 dsRNA感知先天免疫通路,尤其是PKR和 OAS–RNase L 通路:前者抑制蛋白质翻译,后者介导 RNA 降解并切割核糖体 RNA,最终导致细胞生长停滞和死亡。敲除 MAVS、RIG-I 或 MDA5 可以抑制干扰素信号。与敲除PKR类似,这些操作也能够在一定程度上挽救Ku耗竭所导致的人类细胞存活缺陷。
通过交联免疫沉淀测序(CLIP)分析,研究团队进一步发现,Ku能够结合多种 dsRNA分子,其中主要包括灵长类特异性Alu重复序列在反义转录后形成的 RNA 茎环结构。这些RNA主要来源于内含子3′ UTR。此外,Ku在灵长类中的表达水平高于非灵长类哺乳动物,且与Alu序列的扩增程度高度相关。
综上,该研究揭示了Ku蛋白在DNA修复之外的重要生理功能:通过限制Alu来源的dsRNA 诱导的先天免疫反应,Ku帮助灵长类细胞适应Alu重复序列的扩增。这一发现不仅为 Ku 在人类细胞中的高表达及其对细胞存活的必要性提供了新的解释,也揭示了 DNA修复系统与重复序列演化、RNA稳态及先天免疫调控之间的紧密联系。
报告结束后,在场的老师同学与查珊教授进行了踊跃的提问交流。
图5 查珊教授与提问师生进行互动
本次学术报告从PARylation的动态调控出发,探讨了PARP-PARG通路对DNA修复过程的影响,进一步揭示了Ku蛋白在限制RNA诱导的先天免疫反应、帮助灵长类细胞适应Alu重复序列扩增中的重要作用。这些研究不仅为理解 PARP 抑制剂的作用机制及相关细胞毒性提供了新的思路,也拓展了我们对DNA修复网络复杂性及其在基因组演化过程中适应性功能的认识。
谢谢查教授的报告!特别鸣谢开云手机网页登录页面、清华大学生命科学学院对此次论坛的大力支持。
嘉宾介绍
查珊(Shan Zha)教授现任美国哥伦比亚大学Irving医学中心James A. Wolff儿科学教授,并兼任病理学与细胞生物学、微生物学与免疫学教授。2022年,她当选美国临床研究学会(American Society for Clinical Investigation,ASCI)成员。
查珊教授长期致力于 DNA 损伤应答(DNA damage response, DDR)及 DNA双链断裂修复机制的研究,尤其关注非同源末端连接(non-homologous end joining, NHEJ)在淋巴细胞发育、淋巴瘤发生及肿瘤治疗中的作用。其团队建立了多种 DNA 修复相关因子的小鼠模型,率先构建了 ATM、ATR、DNA-PKcs、PARP1 和 PARP2 等关键 DDR 蛋白的催化失活小鼠模型,揭示了药理学抑制与基因敲除可能产生显著不同的生物学效应,进一步阐明了DNA修复蛋白催化活性之外的结构性功能。近年来,查珊教授的研究进一步拓展至 RNA生物学与先天免疫调控,揭示了Ku和 DNA-PK 在RNA代谢及免疫应答中的非经典功能,为理解 DNA修复系统与基因组稳定性、细胞稳态之间的联系提供了新的视角。
查珊教授于北京大学医学部获得医学博士学位,后于约翰·霍普金斯大学获得博士学位,并在哈佛医学院、波士顿儿童医院及霍华德·休斯医学研究所(HHMI)接受博士后训练。2010年,她加入哥伦比亚大学,持续开展DNA损伤修复及相关疾病机制研究。
供稿人:顾卜铭 清华大学生命学院21级博士生
朱邦琦 清华大学生命学院25级博士生